Ein Riese auf zwei Beinen
Tyrannosaurus rex lebte ganz am Ende des Zeitalters der Dinosaurier, kurz vor dem Massenaussterben vor etwa 66 Millionen Jahren 1 2. Seine Skelette stammen aus Gesteinen der Oberkreide Nordamerikas – „Scotty“ zum Beispiel aus Saskatchewan in Kanada, aus etwa 67 Millionen Jahre alten Schichten 3 – und aus der Hell-Creek-Formation in Montana, wo Skelette von Tyrannosaurus im oberen Teil der Formation etwa so häufig sind wie die des Pflanzenfressers Edmontosaurus 2. Ausgewachsene Tiere wogen etwa 6.000–8.000 kg – das größte Exemplar jener Studie von 2011, „Sue“, vielleicht um 9.500 kg – und wuchsen in weniger als 20 Jahren aus Schlüpflingen von weniger als 10 kg zu dieser Größe heran 4.
Wie schnell konnte sich ein solches Tier bewegen? Die Frage entscheidet mit darüber, wie T. rex lebte – als Hetzjäger oder nicht 5 –, und sie ist seit Langem umstritten. Wie Hutchinson und Garcia 2002 zusammenfassten, hielten manche Studien T. rex für auf das Gehen beschränkt oder bestenfalls 11 m/s schnell; andere sprachen sich für Laufgeschwindigkeiten von mindestens 20 m/s aus 6. Biomechanische Modelle allein ergeben Höchstgeschwindigkeiten irgendwo zwischen 5 und 15 m/s 5.
Niemand kann einen Dinosaurier mit der Stoppuhr messen. Aber seine Fußspuren, die Festigkeit seiner Knochen und die Gesetze der Physik grenzen die Antwort ein. Dieser Artikel folgt diesen Spuren – von versteinerten Fährten und der Physik der Größe über die Chemie, die Knochen zu Stein macht, bis zu Computermodellen, die lernen, wie ein Dinosaurier zu gehen.
Von der Fußspur zur Geschwindigkeit in vier Schritten
- Eine Fährte finden. Eine Fährte ist eine Folge von Fußabdrücken desselben Tieres – ein Spurenfossil, also die versteinerte Spur eines Verhaltens, nicht des Körpers. Fährten von Tyrannosauriden sind sehr selten; die ersten wurden erst 2014 beschrieben 7.
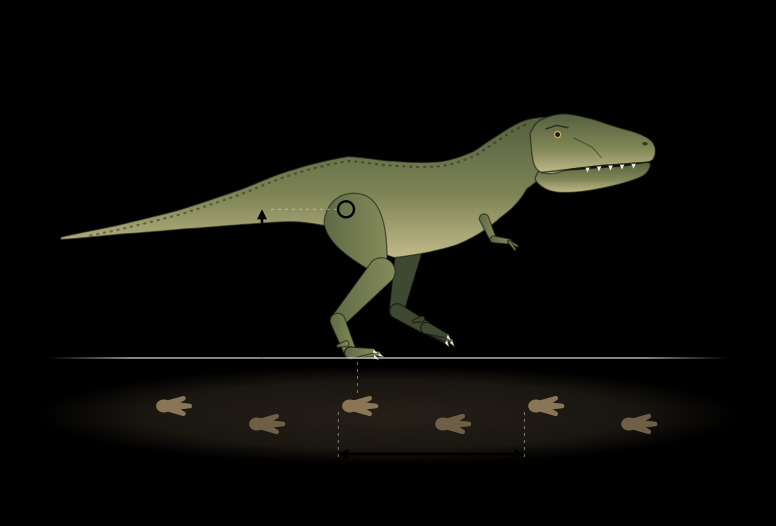
- Den Doppelschritt messen. Die Doppelschrittlänge λ ist der Abstand zweier Abdrücke desselben Fußes; sie umfasst also zwei Schritte 7.
- Die Hüfthöhe schätzen. Die Hüfthöhe h – die Höhe des Hüftgelenks über dem Boden – steht für die Länge des Beins. Man schätzt sie aus der Größe des Fußabdrucks – nach einer groben Regel, die auf Alexander zurückgeht, etwa das Vierfache der Abdrucklänge 7.
- Dynamische Ähnlichkeit anwenden. Tiere unterschiedlicher Größe, die sich ähnlich bewegen, machen Doppelschritte gleicher relativer Länge λ/h. Eine an lebenden Tieren gefundene Regel macht aus λ/h eine Geschwindigkeit 8 9.
Biologie-Linse: gebaut wie eine Wippe
Eine Wippe auf zwei Beinen. T. rex ging auf zwei Beinen. Sein Schwanz machte etwa die Hälfte der Körperlänge oder mehr aus und hielt dem schweren Kopf und Rumpf die Waage: In 3D-Rekonstruktionen liegt der Schwerpunkt nahe der Hüfte, etwas davor. Die Hüftstreckmuskeln mussten den Körper gegen das Kippen nach vorn halten – ein vorgeschlagener Grund dafür, dass sie so groß waren 4.
Ein Schwanz voller Muskeln. Der Schwanz war nicht nur ein Gegengewicht. Scott Persons und Philip Currie rekonstruierten die Schwanzmuskeln anhand von Fossilmaßen, Ansatznarben an den Schwanzknochen und Sektionen heutiger Reptilien: Der M. caudofemoralis, der vom Schwanz zum Oberschenkelknochen zieht, war bei vielen Nicht-Vogel-Theropoden außergewöhnlich groß und bei Tyrannosaurus noch weiter vergrößert. Er ist der wichtigste Muskel, der das Bein bei jedem Schritt nach hinten zieht, und Persons und Currie sehen in seiner Größe einen Hinweis auf größere Sportlichkeit – beim Laufen, beim Gleichgewicht und bei schnellen Wendungen 10. Das Knochenspannungsmodell in der Physical-AI-Linse gibt seinem T. rex großzügige Muskeln und fragt, ob das Skelett die Lasten tragen konnte 5. Beim Gehen hing der Schwanz an Bändern, die elastische Energie speichern konnten 11.
Mächtige Oberschenkel, wachsender Rumpf. John Hutchinson und Kollegen scannten vier große Skelette und ein mutmaßliches Jungtier in 3D und bauten ihre Körper im Computer nach. T. rex hatte wahrscheinlich relativ größere Hüft- und Oberschenkelmuskeln als jedes heute lebende Tier. Während er wuchs, wurde sein Rumpf länger und schwerer, die Beine dagegen relativ kürzer und leichter – Veränderungen, die die relative Leistungsfähigkeit großer Tiere bei der Fortbewegung wohl weiter verringert hätten; die Autoren nennen die Folgen für die Fortbewegung insgesamt allerdings unklar 4. 2020 beschrieben Persons, Currie und Gregory Erickson das Skelett RSM P2523.8, bekannt als „Scotty“: einen ausgewachsenen T. rex, dessen geschätzte Körpermasse die aller anderen bekannten Exemplare übertrifft 12 3.
Schuppen statt Federkleid. Hautabdrücke von Tyrannosaurus und anderen großen Tyrannosauriden zeigen schuppige, reptilienartige Haut. Einige frühe Verwandte von T. rex trugen ein ausgedehntes Federkleid, das aber verloren ging, bevor die großen Tyrannosauriden entstanden 13. Jedes Bild eines lebenden T. rex ist eine Rekonstruktion.
Fußspuren als Verhalten. Richard McCrea und Kollegen beschrieben drei Fährten von Tyrannosauriden aus der Oberkreide von British Columbia in Kanada und benannten ihr neues Ichnotaxon – den Namen für einen Typ von Spurenfossil – Bellatoripes fredlundi. Alle drei Tiere zogen offenbar gleichzeitig in dieselbe Richtung, innerhalb eines 8,5 m breiten Korridors; die Autoren deuten das als Hinweis darauf, dass Tyrannosauriden zeitweise in Gruppen unterwegs waren. Die Abdrücke stammen von Verwandten von T. rex: Ein einzelner Fußabdruck, der fast sicher T. rex zugeschrieben wird, Tyrannosauripus pillmorei, ist etwa 40 % länger, und seine Fährte ist unbekannt 7.
Physik-Linse: das Quadrat-Kubik-Gesetz
Größer heißt nicht einfach stärker. Stell dir vor, du vergrößerst ein Tier, ohne seine Form zu ändern: Jede Länge wird mit einem Faktor k multipliziert. Sein Volumen – und mit ihm Masse und Gewicht – wächst wie k3. Die Querschnitte seiner Knochen und Muskeln, die die Last tragen und die Kraft erzeugen, wachsen nur wie k2. Die mechanische Spannung – Kraft pro Fläche – in Knochen und Muskeln wächst deshalb proportional zu k: Die Skalierung von Fläche zu Volumen sagt voraus, dass die Spannungen mit der Größe zunehmen 14. Dasselbe Quadrat-Kubik-Gesetz wirkt bei kleinen Fliegern umgekehrt: In Wie Insekten fliegen werden die Flügel beim Verkleinern im Verhältnis zum Gewicht größer – dafür müssen sie schneller schlagen.
Ein T. rex von 7.000 kg wiegt hundertmal so viel wie ein Mensch von 70 kg. Wäre er einfach ein vergrößerter Mensch, wären alle seine Längen 1001/3 ≈ 4,6-mal so groß – und ebenso die Spannung in seinen Knochen bei gleicher Haltung und Bewegung (eine Rechnung für diesen Artikel, keine Messung).
Wie Tiere damit umgehen. Lebende Säugetiere verhindern diesen Anstieg der Spannung bis zu einer Größe von etwa 300 kg, indem sie ihre Haltung ändern: Größere Säugetiere laufen mit gestreckteren Beinen, was ihren Muskeln einen besseren Hebel gegenüber der Bodenreaktionskraft verschafft. Oberhalb dieser Größe zeigen sehr große Säugetiere stärker veränderte Skelettproportionen und eine eingeschränkte Bewegungsfähigkeit 14. An 474 Arten von 30 µg bis 100 Tonnen fanden Myriam Hirt und Kollegen, dass die Höchstgeschwindigkeit mit der Körpermasse erst steigt und dann wieder fällt: Die größten Tiere sind nicht die schnellsten, weil die Zeit zum Beschleunigen begrenzt ist 15.
Muskeln und Knochen als Tempolimit. Hutchinson und Mariano Garcia berechneten die Mindestmasse an tragender Streckmuskulatur, die ein Bein für schnelles Rennen braucht. Ihr Modell funktionierte für Alligatoren und Hühner und zeigte, dass kleine Dinosaurier gute Läufer sein konnten – ein ausgewachsener T. rex hätte aber selbst mit großzügigen Annahmen eine unvernünftig große Beinmuskelmasse gebraucht, um schnell zu rennen 6. Später kam Hutchinson zu dem Schluss, dass die Hüftstrecker bei großen Theropoden offenbar eine entscheidende Grenze für das Rennen sind 16. Robert McNeill Alexander fasst ein älteres Argument aus der Knochenfestigkeit zusammen: Bei geometrisch ähnlichen Tieren sinkt die Biegefestigkeit der Beinknochen im Verhältnis zum Körpergewicht wie die Körpermasse hoch −0,33, und eine Analyse von T.-rex-Knochen durch James Farlow und Kollegen kam zu dem Schluss, dass er kaum schneller als 10 m/s gerannt sein dürfte 8.
Mathematik-Linse: die Geschwindigkeit in einer Fährte
Eine Zahl für alle Größen. In Wie wir gehen erklärt die Froude-Zahl, warum ein Kind und ein Erwachsener bei derselben „Geschwindigkeitszahl“ vom Gehen ins Laufen wechseln. Sie vergleicht die Zentripetalbeschleunigung eines Körpers auf einer Kurvenbahn mit der Schwerkraft:
Dabei ist v die Geschwindigkeit, g = 9,81 m/s² die Fallbeschleunigung und h die Hüfthöhe. Tiere, die sich mit derselben Froude-Zahl bewegen, bewegen sich näherungsweise dynamisch ähnlich: Sie machen Doppelschritte etwa gleicher relativer Länge λ/h 8. Hier wenden wir dieses Werkzeug auf ein Tier an, das noch nie jemand gehen gesehen hat.
Alexanders Regel. 1976 passte Alexander den Zusammenhang zwischen relativer Doppelschrittlänge und Froude-Zahl an, überwiegend an Daten von Säugetieren 8 11:
In dieser Form geben William Sellers und Phillip Manning die Regel an 9. Löst man sie nach der Geschwindigkeit auf – erst nach Fr, dann nach v –, erhält man die Formel für Fährten (eine kurze Rechnung für diesen Artikel; dieselbe Formel mit dem Faktor 0,25 · √g ≈ 0,78 steht in der Fährtenstudie von McCrea und Kollegen 7):
Ein Rechenbeispiel. In der von McCrea und Kollegen beschriebenen Tyrannosauridenfährte beträgt die Doppelschrittlänge 3,46 m. Für die Hüfthöhe nutzten sie eine auf Tyrannosauriden zugeschnittene Gleichung: 2,87 m bei gestrecktem Bein und 2,30 m mit gebeugtem Knie und Sprunggelenk, was sie für anatomisch realistischer hielten. Damit erhielten McCrea und Kollegen 6,4 bis 8,5 km/h – ein Gehen 7. Die Informatik-Linse unten wiederholt diese Rechnung.
Wie genau ist das? Nicht sehr. Die Messpunkte der Säugetiere streuen weit um die Regressionsgerade: Eine bestimmte Doppelschrittlänge kann bei Geschwindigkeiten auftreten, die bis zum Faktor 1,5 von der Vorhersage abweichen. Die aus dem Fußabdruck geschätzte Hüfthöhe und die Beschaffenheit des Bodens bringen weitere Fehler. Trotzdem, schreibt Alexander, besteht keine Gefahr, einen Spaziergang mit einem Sprint zu verwechseln 8.
Eine zweite Uhr: der Schwanz. Van Bijlert, van Soest und Schulp schätzten die bevorzugte Gehgeschwindigkeit von T. rex auf ganz andere Weise. Sie behandelten den an Bändern aufgehängten Schwanz als Feder-Masse-System und berechneten seine Eigenfrequenz: 0,66 Schwingungen pro Sekunde. Im Takt dieser Schwingung zu gehen würde Energie sparen. Mit einer Schrittlänge von 1,94 m, skaliert aus der Tyrannosauridenfährte, ergibt sich eine Gehgeschwindigkeit von 1,28 m/s oder 4,6 km/h (Spanne 0,80–1,64 m/s) – weniger als die 2–3 m/s, die die dynamische Ähnlichkeit für große Theropoden typischerweise liefert 11.
Chemie-Linse: wie Knochen zu Stein wird
Woraus Knochen besteht. Lebender Knochen ist ein Verbundwerkstoff: ein Gerüst aus dem Protein Kollagen – Kollagen I ist sein wichtigster organischer Bestandteil 17 –, versteift durch winzige Kristalle eines Calciumphosphat-Minerals, Hydroxylapatit, Ca5(PO4)3(OH) 3.
Diagenese: der langsame chemische Umbau. Nach der Einbettung bleibt Knochen nicht einfach erhalten. Er ist ein poröses, offenes System, durch das Moleküle und Mikroben wandern können 18, und seine Minerale verändern sich mit der Zeit. Diese Veränderungen heißen Diagenese. Das Mineral des Knochens, Bioapatit, wandelt sich über geologische Zeiträume in thermodynamisch stabilere Phasen um; wie schnell das geschieht und wie stark Ablagerungsumgebung und Mikroben es steuern, ist noch nicht vollständig verstanden 19.
Vom Hydroxylapatit zum Fluorapatit. Eine dieser Veränderungen lässt sich an T. rex selbst nachweisen. In einer Rippe von „Scotty“ fanden Mitchell und Kollegen in der Knochenmatrix Calcium, Phosphor, Sauerstoff und Fluor, was darauf hindeutet, dass der ursprüngliche Hydroxylapatit zumindest teilweise in Fluorapatit, Ca5(PO4)3F, umgewandelt wurde, wobei Fluoridionen die Plätze von Hydroxidionen eingenommen haben 3. In einer Dinosaurierrippe aus Südkorea fanden Jung-Kyun Kim und Kollegen ebenfalls Fluorapatitkristalle als Zeichen der diagenetischen Umwandlung des ursprünglichen Bioapatits 20.
Poren füllen: Permineralisation. Knochen ist von Kanälen für Blutgefäße durchzogen. Bei der Permineralisation kristallisieren vom Grundwasser herangetragene Minerale in diesen Hohlräumen aus. In der koreanischen Rippe füllte vor allem Calcit (Calciumcarbonat) die Gefäßkanäle und Risse, während Tonminerale die kleinen Poren besetzten 20. In Scottys Rippe ist ein Netz gefäßartiger Strukturen – nach Ansicht der Autoren beim Heilen eines Bruchs entstanden – als Abgüsse aus Pyrit (Eisensulfid) erhalten, teilweise zu den Eisenoxiden Goethit oder Hämatit oxidiert: permineralisierte Abgüsse. Ursprüngliches Weichgewebe ließ sich mit den verwendeten Methoden nicht gewinnen 3.
Die Weichgewebe-Kontroverse. Kann ursprüngliches organisches Material mehr als 66 Millionen Jahre überdauern? Hier sind sich die Forschenden uneinig, und die Frage ist offen.
- Die Argumente für eine Erhaltung. 2005 lösten Mary Schweitzer und Kollegen das Mineral aus einem Beinknochen von T. rex (Exemplar MOR 1125) und fanden durchsichtige, flexible, hohle Strukturen, die wie Blutgefäße aussahen, mit zellähnlichen Mikrostrukturen 21. 2007 berichteten sie, dass Kollagen I in geringen Konzentrationen erhalten sei 17, und John Asara und Kollegen berichteten über Proteinsequenzen aus dem 68 Millionen Jahre alten T.-rex-Knochen, gewonnen mit Massenspektrometrie 22. Schweitzer und Kollegen schlugen später eine chemische Erklärung vor: Eisen aus dem Blut könnte Proteine vernetzen und schützen. In einem Modell aus Blutgefäßen des Straußes machte Hämoglobin das Gewebe mehr als 200-mal stabiler 23. 2019 berichteten Elizabeth Boatman, Schweitzer und Kollegen über Kollagen I in den äußeren Schichten von Blutgefäßen eines zweiten T. rex (USNM 555000) und argumentierten, dass nichtenzymatische Vernetzungen – durch Fenton-Chemie mit Eisen und durch Glykierung – sie wahrscheinlich stabilisiert haben 24.
- Die Argumente dagegen. Thomas Kaye und Kollegen fanden ähnliche Überzüge in vielen fossilen Knochen und deuteten sie als bakterielle Biofilme; eine Radiokarbondatierung wies auf einen relativ jungen Ursprung hin, und die runden „Zellen“ bestimmten sie als aus Pyrit entstandene Eisen-Sauerstoff-Kügelchen 25. Mike Buckley und Kollegen wandten Prüfverfahren aus der Forschung an alter DNA auf die Proteindaten an: Die Mastodon-Proben bestanden sie, die T.-rex-Daten den Befunden nach wohl nicht 26. Evan Saitta und Kollegen gruben den Knochen eines Horndinosauriers mit aseptischen Methoden aus und fanden, dass sich seine „Weichgewebe“ chemisch von Kollagen unterschieden, während im Knochen eine reiche Gemeinschaft von Mikroben lebte 18.
Zwischen den Lagern steht eine Neuauswertung der T.-rex-Massenspektren durch Marshall Bern und Kollegen: Sie fand übliche Laborverunreinigungen und Bodenbakterien – aber auch vogelähnliches Hämoglobin und Kollagen 27. Die Debatte ist nicht entschieden: Selbst die Studie von 2019, die über Kollagen berichtet, nennt den Erhalt ursprünglichen Weichgewebes umstritten 24.
Eine Uhr im Gestein. Das Alter der Gesteine misst man mit einer Uhr, die Chemiker ablesen: Bei der 40Ar/39Ar-Datierung liefert der langsame radioaktive Zerfall von Kalium-40 zu Argon-40 in Mineralen das Alter einer Gesteinsschicht. Mit hochpräzisen 40Ar/39Ar-Altern der Schichten an der Kreide-Paläogen-Grenze zeigten Paul Renne und Kollegen, dass der Chicxulub-Einschlag und das Massenaussterben, das vor etwa 66 Millionen Jahren das Zeitalter der Nicht-Vogel-Dinosaurier beendete, höchstens 32.000 Jahre auseinanderliegen 1.
Informatik-Linse: ein Tacho für Fußspuren
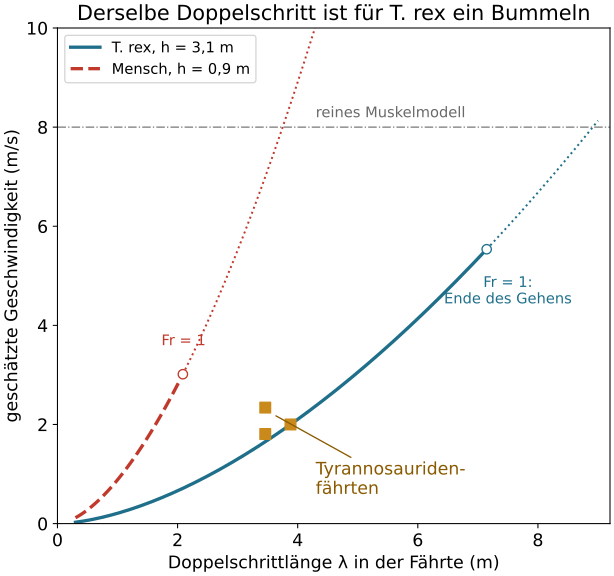
Wie schnell gingen die Erzeuger der Tyrannosauridenfährten, wie schneidet T. rex im Vergleich zum Menschen ab, und wo endet das Gehen? Das Programm unten wendet Alexanders Regel λ/h ≈ 2,3 Fr0,3 9 auf die gemessene Fährte an 7, skaliert sie auf einen ausgewachsenen T. rex und vergleicht das Ergebnis mit der Grenze des Gehens und mit einem Computermodell, das nur durch die Muskeln begrenzt ist. Eingaben und Annahmen: die Doppelschrittlänge von 3,46 m und die beiden Hüfthöhen von 2,87 m und 2,30 m 7; ein Doppelschritt von 3,88 m (zwei Schritte zu 1,94 m), den van Bijlert und Kollegen durch Skalieren der Tyrannosauridenfährte auf die Fußabdrucklänge des ausgewachsenen T. rex „Trix“ erhielten, und die dafür angenommene Hüfthöhe von 3,1 m 11; eine Streuung der Regel um den Faktor 1,5 8; die Höchstgeschwindigkeit von 8,0 m/s und die Beinlänge von 3,09 m des reinen Muskelmodells 9. Doppelschritt (1,40 m) und Hüfthöhe (0,90 m) des Menschen sind angenommen, typisch für Erwachsene.
import numpy as np
import matplotlib.pyplot as plt

# Wie schnell war der Erzeuger einer fossilen Fährte? Geschwindigkeit aus Doppelschrittlänge und Hüfthöhe.
G = 9.81                 # Fallbeschleunigung (m/s²)
HIP_TREX = 3.10          # Hüfthöhe des ausgewachsenen T. rex „Trix“ (m), wie bei van Bijlert et al.
HIP_HUMAN = 0.90         # Hüfthöhe eines erwachsenen Menschen (m) – angenommen
UNCERTAINTY = 1.5        # Säugetierdaten streuen um die Regel bis zum Faktor 1,5
TRACKWAYS = {            # Name: (Doppelschrittlänge λ in m, Hüfthöhe h in m)
    "Tyrannosauridenfährte, gestrecktes Bein": (3.46, 2.87),
    "Tyrannosauridenfährte, gebeugtes Bein": (3.46, 2.30),
    "dieselbe Fährte, auf T. rex skaliert": (3.88, HIP_TREX),   # von van Bijlert et al. auf den Fuß von „Trix“ skaliert
    "Mensch beim Gehen (angenommen)": (1.40, HIP_HUMAN),
}
SIMULATED_TOP_SPEED = 8.0    # T.-rex-Modell, nur durch Muskeln begrenzt (m/s), Beinlänge 3,089 m


def froude(speed, hip, g=G):
    """Froude-Zahl v²/(g·h): die „Geschwindigkeitszahl“, die bei dynamisch ähnlichen Gangarten gleich ist."""
    return speed**2 / (g * hip)


def speed_from_trackway(stride, hip, g=G):
    """Alexanders Regel für dynamisch ähnliche Tiere, λ/h ≈ 2,3·Fr^0,3, nach v aufgelöst:
    Fr = (λ / 2,3h)^(1/0,3), v = √(Fr·g·h) ≈ 0,25·√g·λ^1,67·h^-1,17."""
    fr = (stride / (2.3 * hip)) ** (1 / 0.3)
    return np.sqrt(fr * g * hip)


def walking_limit(hip, g=G):
    """Bei Fr = 1 kann die Schwerkraft den Körper nicht mehr auf seinem Bogen über dem Fuß halten: v = √(g·h)."""
    return np.sqrt(g * hip)


for name, (stride, hip) in TRACKWAYS.items():
    v = speed_from_trackway(stride, hip)
    print(f"{name}: λ/h = {stride / hip:.2f} → {v:.1f} m/s = {3.6 * v:.1f} km/h (Fr = {froude(v, hip):.2f})")

v_trex = speed_from_trackway(*TRACKWAYS["dieselbe Fährte, auf T. rex skaliert"])
print(f"mit der Streuung der Regel (×/÷ {UNCERTAINTY}) ergibt die skalierte T.-rex-Fährte "
      f"{3.6 * v_trex / UNCERTAINTY:.0f}–{3.6 * v_trex * UNCERTAINTY:.0f} km/h")
v_limit = walking_limit(HIP_TREX)
print(f"Grenze des Gehens für T. rex (Fr = 1): {v_limit:.1f} m/s = {3.6 * v_limit:.0f} km/h")
print(f"reines Muskelmodell: {SIMULATED_TOP_SPEED:.1f} m/s = {3.6 * SIMULATED_TOP_SPEED:.0f} km/h "
      f"(Fr = {froude(SIMULATED_TOP_SPEED, 3.089):.1f}) – eine Gangart des Rennens")

plt.rcParams["font.size"] = 13      # große Schrift: Das Diagramm bleibt auf dem Handy lesbar
fig, ax = plt.subplots(figsize=(6.4, 6.0), layout="constrained")
for hip, label, color, style in ((HIP_TREX, "T. rex, h = 3,1 m", "#1f6f8b", "-"),
                                 (HIP_HUMAN, "Mensch, h = 0,9 m", "#c0392b", "--")):
    stride = np.linspace(0.3, 9.0, 400)
    v = speed_from_trackway(stride, hip)
    walk = v <= walking_limit(hip)
    ax.plot(stride[walk], v[walk], lw=2.5, ls=style, color=color, label=label)
    ax.plot(stride[~walk], v[~walk], lw=1.5, ls=":", color=color)
    i = np.argmax(~walk)
    ax.plot(stride[i], v[i], "o", ms=7, mfc="white", color=color)
ax.text(7.5, 5.0, "Fr = 1:\nEnde des Gehens", va="top", ha="center", fontsize=11, color="#1f6f8b")
ax.text(2.1, 3.6, "Fr = 1", ha="center", fontsize=11, color="#c0392b")
for name, (stride, hip) in list(TRACKWAYS.items())[:3]:
    ax.plot(stride, speed_from_trackway(stride, hip), "s", ms=8, color="#c98a1b")
ax.annotate("Tyrannosauriden-\nfährten", xy=(3.6, 2.2), xytext=(4.3, 0.6), color="#8a5a00",
            arrowprops=dict(arrowstyle="-", color="#8a5a00"))
ax.axhline(SIMULATED_TOP_SPEED, color="grey", lw=1, ls="-.")
ax.text(4.3, SIMULATED_TOP_SPEED + 0.2, "reines Muskelmodell", fontsize=11, color="dimgrey")
ax.set_xlabel("Doppelschrittlänge λ in der Fährte (m)")
ax.set_ylabel("geschätzte Geschwindigkeit (m/s)")
ax.set_xlim(0, 9.2)
ax.set_ylim(0, 10)
ax.set_title("Derselbe Doppelschritt ist für T. rex ein Bummeln")
ax.legend(loc="upper left", fontsize=11)
plt.show()
Ausgabe · das gibt der Code aus, bei jedem Build neu ausgeführt
Tyrannosauridenfährte, gestrecktes Bein: λ/h = 1.21 → 1.8 m/s = 6.5 km/h (Fr = 0.12)
Tyrannosauridenfährte, gebeugtes Bein: λ/h = 1.50 → 2.3 m/s = 8.4 km/h (Fr = 0.24)
dieselbe Fährte, auf T. rex skaliert: λ/h = 1.25 → 2.0 m/s = 7.2 km/h (Fr = 0.13)
Mensch beim Gehen (angenommen): λ/h = 1.56 → 1.5 m/s = 5.6 km/h (Fr = 0.27)
mit der Streuung der Regel (×/÷ 1.5) ergibt die skalierte T.-rex-Fährte 5–11 km/h
Grenze des Gehens für T. rex (Fr = 1): 5.5 m/s = 20 km/h
reines Muskelmodell: 8.0 m/s = 29 km/h (Fr = 2.1) – eine Gangart des Rennens
Was das Ergebnis lehrt:
- Die Fährten zeigen ein Gehen. Die Tyrannosauridenfährte ergibt 6,5 km/h mit gestrecktem und 8,4 km/h mit gebeugtem Bein – nahe an den von McCrea und Kollegen veröffentlichten 6,4–8,5 km/h (± 0,4 km/h). Auf einen ausgewachsenen T. rex skaliert, ergibt dieselbe Fährte 7,2 km/h bei einer Froude-Zahl von nur 0,13.
- Die Größe ändert alles. Derselbe Doppelschritt von 3,5 m wäre für einen Menschen ein schneller Lauf, für T. rex dagegen ein Bummeln: Im Verhältnis zu seinen langen Beinen ist der Doppelschritt kurz. Der Vergleich der Froude-Zahlen – 0,13 für T. rex, 0,27 für einen Menschen, der mit 5,6 km/h geht – zeigt, dass die skalierte Fährte für ein Tier dieser Größe ein langsames Gehen beschreibt.
- Robust und unsicher zugleich. Mit der Streuung der Regel lässt die skalierte Fährte alles von 5 bis 11 km/h zu – die genaue Zahl ist unsicher, die Gangart nicht.
- Wo das Gehen endet. Im Pendelmodell endet das Gehen bei Fr = 1, hier bei 5,5 m/s oder 20 km/h – eine theoretische Obergrenze, keine gemessene Geschwindigkeit. Das reine Muskelmodell erreichte 8,0 m/s, was Fr = 2,1 entspricht – eine Gangart des Rennens. Ob T. rex sie erreichen konnte, ist genau das, was das Knochenspannungsmodell infrage stellt (Physical-AI-Linse).
Probier es selbst:
- Nimm die Beinlänge von „Sue“, 3,30 m, als ungefähre Hüfthöhe für den ausgewachsenen T. rex: Setze
HIP_TREX = 3.30. Die skalierte Fährte sinkt auf 6,7 km/h, und die Grenze des Gehens steigt auf 5,7 m/s – bei gleichem Doppelschritt ergibt ein größeres Tier eine geringere Geschwindigkeit und Froude-Zahl. - Setze den Doppelschritt des reinen Muskelmodells ein, 9,56 m: Ändere
(3.88, HIP_TREX)in(9.56, HIP_TREX). Die Regel liefert nun 9,0 m/s bei Fr = 2,66 – etwa 1 m/s schneller als die 8,0 m/s der Simulation; Sellers und Manning fanden, dass die simulierten Doppelschritte gut zur Regel passen 9. Ein solcher Doppelschritt ist aus keiner Tyrannosauridenfährte bekannt.
Getestete Ausgabe mit HIP_TREX = 3.30
Tyrannosauridenfährte, gestrecktes Bein: λ/h = 1.21 → 1.8 m/s = 6.5 km/h (Fr = 0.12)
Tyrannosauridenfährte, gebeugtes Bein: λ/h = 1.50 → 2.3 m/s = 8.4 km/h (Fr = 0.24)
dieselbe Fährte, auf T. rex skaliert: λ/h = 1.18 → 1.9 m/s = 6.7 km/h (Fr = 0.11)
Mensch beim Gehen (angenommen): λ/h = 1.56 → 1.5 m/s = 5.6 km/h (Fr = 0.27)
mit der Streuung der Regel (×/÷ 1.5) ergibt die skalierte T.-rex-Fährte 4–10 km/h
Grenze des Gehens für T. rex (Fr = 1): 5.7 m/s = 20 km/h
reines Muskelmodell: 8.0 m/s = 29 km/h (Fr = 2.1) – eine Gangart des Rennens
Getestete Ausgabe mit (9.56, HIP_TREX)
Tyrannosauridenfährte, gestrecktes Bein: λ/h = 1.21 → 1.8 m/s = 6.5 km/h (Fr = 0.12)
Tyrannosauridenfährte, gebeugtes Bein: λ/h = 1.50 → 2.3 m/s = 8.4 km/h (Fr = 0.24)
dieselbe Fährte, auf T. rex skaliert: λ/h = 3.08 → 9.0 m/s = 32.4 km/h (Fr = 2.66)
Mensch beim Gehen (angenommen): λ/h = 1.56 → 1.5 m/s = 5.6 km/h (Fr = 0.27)
mit der Streuung der Regel (×/÷ 1.5) ergibt die skalierte T.-rex-Fährte 22–49 km/h
Grenze des Gehens für T. rex (Fr = 1): 5.5 m/s = 20 km/h
reines Muskelmodell: 8.0 m/s = 29 km/h (Fr = 2.1) – eine Gangart des Rennens
Physical-AI-Linse: Dinosaurier, die im Computer gehen lernen
Physical AI – verkörperte künstliche Intelligenz, also Maschinen, die in der physischen Welt wahrnehmen und handeln – meint meist Roboter. Dieselben Werkzeuge können aber auch ein ausgestorbenes Tier als simulierten Roboter wieder zum Leben erwecken: einen Körper aus starren Segmenten, Gelenken und virtuellen Muskeln, der selbst herausfinden muss, wie er sich bewegt.
Evolutionäre Robotik. Sellers und Manning bauten einfache Muskel-Skelett-Modelle von drei lebenden und fünf ausgestorbenen Zweibeinern, von Compsognathus bis Tyrannosaurus. Niemand sagte den Modellen, wie man geht. Stattdessen probierte ein evolutionärer Algorithmus – ein von der natürlichen Selektion inspiriertes Suchverfahren – Muster der Muskelaktivierung aus: Eine Population von 1.000 Kandidaten wurde über bis zu 1.000 Generationen verbessert, und jeder Kandidat wurde danach bewertet, wie weit das Modell in einer festen Zeit kam, bei Tyrannosaurus in 5 s. Ein Modell, das umfiel, schnitt schlecht ab 9. Diesen Ansatz nennt man evolutionäre Robotik.
Was der virtuelle T. rex lernte. Das 6.000-kg-Modell erreichte eine Höchstgeschwindigkeit von 8,0 m/s, etwa 29 km/h. Für lebende Arten stimmten die Modelle recht gut mit Höchstgeschwindigkeiten aus der Literatur überein – ein Straußenmodell erreichte 15,4 m/s gegenüber 17 m/s, ein Menschenmodell 7,9 m/s gegenüber 10 m/s 9. In diesen Modellen waren die Muskeln die einzige Grenze 5.
Das Skelett kommt dazu. Zehn Jahre später ließen Sellers und Kollegen den Optimierer nach Gangarten suchen und berechneten dabei auch die Spannung in den Beinknochen. Sie vermuteten, dass eine Suche allein nach der schnellsten Gangart solche übersehen könnte, die nur wenig langsamer, aber viel schonender für das Skelett sind. Mit lockerer Spannungsgrenze (über 200 MPa) erreichte das Modell höchstens 7,7 m/s. Wurde die höchste Knochenspannung auf etwa 100 MPa begrenzt, typisch für die Knochen lebender Tiere, sank seine Geschwindigkeit auf eine Froude-Zahl von etwa 1 – die übliche Obergrenze des Gehens. Jede Gangart mit echter Flugphase überlastete das Skelett; T. rex war also sehr wahrscheinlich auf das Gehen beschränkt 5. Die Autoren ergänzen, dass das spannungsbegrenzte Modell seinen Schwerpunkt kaum hob und senkte und dass ein schonendes, vogelartiges „Grounded Running“ – eine laufähnliche Bewegung ohne Flugphase – zu zweibeinigen Dinosauriern passen könnte 5. Ihr Simulationssystem GaitSym ist Open Source 5.
Roboter, die Fossilien prüfen. Die Idee funktioniert auch mit echter Hardware. John Nyakatura, Auke Ijspeert und Kollegen rekonstruierten den Gang von Orobates pabsti, einem Stamm-Amnioten – einem frühen vierbeinigen Landtier –, das von einem vollständigen fossilen Skelett zusammen mit seinen Fährten bekannt ist. Sie kombinierten Messungen an vier lebenden Arten, Simulationen und einen Roboter, um die Gangarten herauszufiltern, die zu den Fußspuren und zur Physik passen 28.
Auch schwere Roboter spüren Größeneffekte. Ingenieure von Laufrobotern bekommen die Folgen der Größe ebenfalls zu spüren. Eine Übersicht über Größeneffekte in der Bionik von Valentina Perricone und Kollegen zitiert eine Studie an einem sechsbeinigen Roboter: Je schwerer der Roboter wurde, desto größer wurden die Kräfte an seinen Füßen, das maximale Drehmoment in den Gelenken und die benötigte Leistung; Größeneffekte bei Robotern entsprechen den Anpassungsproblemen von Tieren 29. Nach derselben Überlegung – einer Schlussfolgerung für diesen Artikel, nicht einem Ergebnis der Studie – müsste ein Roboter von der Größe eines T. rex mit derselben Physik der Größe zurechtkommen wie das Tier.
Was wir noch nicht wissen
Das Knochenspannungsmodell spricht für Gehen, frühere Muskelmodelle bezweifelten schon, dass T. rex schnell rennen konnte, und die bekannten Fußspuren sind damit vereinbar, können es aber nicht prüfen: Ein ausgewachsener T. rex rannte sehr wahrscheinlich nicht mit allen Füßen in der Luft 5 6 – auch wenn die Fährten, von Verwandten mit kleineren Füßen hinterlassen, nur zeigen, wie diese gingen, nicht wie schnell sie sein konnten 7. Wie schnell er ging und wie sich seine Fortbewegung veränderte, während er vom leichten Jungtier zum Riesen heranwuchs, ist weiter umstritten, denn Muskeln und Sehnen bleiben fast nie erhalten, und jedes Modell hängt von Annahmen über sie ab 11 5 4. Mehr Fährten würden helfen: Die bekannten Tyrannosauridenfährten zeigen nur Gehen, und künftige Modelle können sie als Kontrolle nutzen 7.
Die Chemie fossiler Knochen bleibt ebenso offen. Neue Werkzeuge wie Synchrotron-Röntgenstrahlung erlauben es, Strukturen im Inneren eines Knochens abzubilden und ihre Chemie zu kartieren, und heilende Brüche, reich an neuen Blutgefäßen, könnten künftig gute Orte für die Suche nach erhaltenem Weichgewebe sein 3. Ob ursprüngliche Dinosaurierproteine Dutzende Millionen Jahre überdauern können, werden erst Studien entscheiden, die Verunreinigungen ausschließen und Erhaltungsmechanismen überprüfen 18 24.
Häufige Fragen
Wie schnell konnte Tyrannosaurus rex rennen?
Wahrscheinlich nicht sehr schnell. Biomechanische Modelle ergeben Höchstgeschwindigkeiten zwischen etwa 5 und 15 Metern pro Sekunde, je nach Annahmen über Muskeln, die fast nie versteinern. Ein Modell, das zusätzlich die Festigkeit der Knochen prüft, fand, dass echtes Rennen das Skelett wahrscheinlich überlastet hätte – T. rex war also sehr wahrscheinlich auf Gangarten des Gehens beschränkt. Im Pendelmodell liegt die theoretische Obergrenze des Gehens (Froude-Zahl 1) bei einer Hüfthöhe von 3,1 Metern bei etwa 20 km/h – eine Grenze des Modells, keine gemessene Geschwindigkeit.
Wie schätzt man die Geschwindigkeit aus Dinosaurierfährten?
Man misst die Doppelschrittlänge – den Abstand zweier Abdrücke desselben Fußes – und schätzt die Hüfthöhe, zum Beispiel als etwa das Vierfache der Fußabdrucklänge. Tiere unterschiedlicher Größe, die sich ähnlich bewegen, machen Doppelschritte gleicher relativer Länge – Doppelschrittlänge geteilt durch Hüfthöhe. Eine an lebenden Tieren gefundene Regel liefert dann die Geschwindigkeit. Die Methode ist grob: Allein die Streuung der Daten bedeutet, dass die wahre Geschwindigkeit bis zum Faktor 1,5 von der Schätzung abweichen kann, und die geschätzte Hüfthöhe bringt weitere Fehler.
Gibt es Fußspuren von T. rex?
Kaum. Die ersten Fährten von Tyrannosauriden – der Familie von T. rex – wurden 2014 aus Kanada beschrieben; sie stammen von Verwandten mit kleineren Füßen als T. rex, und die Tiere gingen. Ein einzelner großer Fußabdruck mit dem Namen Tyrannosauripus pillmorei gilt als fast sicher von T. rex, gehört aber zu keiner Fährte.
Hat man Proteine von T. rex gefunden?
Das ist umstritten. 2005 und 2007 berichtete ein Forschungsteam über flexible Blutgefäße und Spuren von Kollagen in einem T.-rex-Knochen. Andere Forschende deuten die Strukturen als bakterielle Biofilme oder junge Verunreinigungen, und eine Neuauswertung der Proteindaten fand Laborverunreinigungen und Bodenbakterien, aber auch vogelähnliches Hämoglobin und Kollagen. Die Frage ist offen.
Hatte T. rex Federn?
Hautabdrücke von Tyrannosaurus und anderen großen Tyrannosauriden zeigen Schuppen. Einige frühe Verwandte von T. rex trugen ein ausgedehntes Federkleid, das aber verloren ging, bevor die großen Tyrannosauriden entstanden. Jedes Bild eines lebenden T. rex bleibt eine Rekonstruktion.
Quellen
- Renne, P. R., Deino, A. L., Hilgen, F. J., Kuiper, K. F., Mark, D. F., Mitchell, W. S., Morgan, L. E., Mundil, R., Smit, J. (2013). Time Scales of Critical Events Around the Cretaceous-Paleogene Boundary. Science 339, 684–687. doi:10.1126/science.1230492
- Horner, J. R., Goodwin, M. B., Myhrvold, N. (2011). Dinosaur Census Reveals Abundant Tyrannosaurus and Rare Ontogenetic Stages in the Upper Cretaceous Hell Creek Formation (Maastrichtian), Montana, USA. PLoS ONE 6, e16574. doi:10.1371/journal.pone.0016574 · Open Access
- Mitchell, J. L., Barbi, M., McKellar, R. C., Cliveti, M., Coulson, I. M. (2025). In situ analysis of vascular structures in fractured Tyrannosaurus rex rib. Scientific Reports 15, 20327. doi:10.1038/s41598-025-06981-z · Open Access
- Hutchinson, J. R., Bates, K. T., Molnar, J., Allen, V., Makovicky, P. J. (2011). A Computational Analysis of Limb and Body Dimensions in Tyrannosaurus rex with Implications for Locomotion, Ontogeny, and Growth. PLoS ONE 6, e26037. doi:10.1371/journal.pone.0026037 · Open Access
- Sellers, W. I., Pond, S. B., Brassey, C. A., Manning, P. L., Bates, K. T. (2017). Investigating the running abilities of Tyrannosaurus rex using stress-constrained multibody dynamic analysis. PeerJ 5, e3420. doi:10.7717/peerj.3420 · Open Access
- Hutchinson, J. R., Garcia, M. (2002). Tyrannosaurus was not a fast runner. Nature 415, 1018–1021. doi:10.1038/4151018a
- McCrea, R. T., Buckley, L. G., Farlow, J. O., Lockley, M. G., Currie, P. J., Matthews, N. A., Pemberton, S. G. (2014). A ‘Terror of Tyrannosaurs’: The First Trackways of Tyrannosaurids and Evidence of Gregariousness and Pathology in Tyrannosauridae. PLoS ONE 9, e103613. doi:10.1371/journal.pone.0103613 · Open Access
- Alexander, R. M. (2006). Dinosaur biomechanics. Proceedings of the Royal Society B: Biological Sciences 273, 1849–1855. doi:10.1098/rspb.2006.3532 · Open Access
- Sellers, W. I., Manning, P. L. (2007). Estimating dinosaur maximum running speeds using evolutionary robotics. Proceedings of the Royal Society B: Biological Sciences 274, 2711–2716. doi:10.1098/rspb.2007.0846 · Open Access
- Persons, W. S., Currie, P. J. (2011). The Tail of Tyrannosaurus: Reassessing the Size and Locomotive Importance of the M. caudofemoralis in Non‐Avian Theropods. The Anatomical Record 294, 119–131. doi:10.1002/ar.21290
- van Bijlert, P. A., van Soest, A. J., Schulp, A. S. (2021). Natural Frequency Method: estimating the preferred walking speed of Tyrannosaurus rex based on tail natural frequency. Royal Society Open Science 8, 201441. doi:10.1098/rsos.201441 · Open Access
- Persons, W. S., Currie, P. J., Erickson, G. M. (2020). An Older and Exceptionally Large Adult Specimen of Tyrannosaurus rex. The Anatomical Record 303, 656–672. doi:10.1002/ar.24118
- Bell, P. R., Campione, N. E., Persons, W. S., Currie, P. J., Larson, P. L., Tanke, D. H., Bakker, R. T. (2017). Tyrannosauroid integument reveals conflicting patterns of gigantism and feather evolution. Biology Letters 13, 20170092. doi:10.1098/rsbl.2017.0092 · Open Access
- Biewener, A. A. (2005). Biomechanical consequences of scaling. Journal of Experimental Biology 208, 1665–1676. doi:10.1242/jeb.01520
- Hirt, M. R., Jetz, W., Rall, B. C., Brose, U. (2017). A general scaling law reveals why the largest animals are not the fastest. Nature Ecology & Evolution 1, 1116–1122. doi:10.1038/s41559-017-0241-4
- Hutchinson, J. R. (2004). Biomechanical modeling and sensitivity analysis of bipedal running ability. II. Extinct taxa. Journal of Morphology 262, 441–461. doi:10.1002/jmor.10240
- Schweitzer, M. H., Suo, Z., Avci, R., Asara, J. M., Allen, M. A., Arce, F. T., Horner, J. R. (2007). Analyses of Soft Tissue from Tyrannosaurus rex Suggest the Presence of Protein. Science 316, 277–280. doi:10.1126/science.1138709
- Saitta, E. T., Liang, R., Lau, M. C., Brown, C. M., Longrich, N. R., Kaye, T. G., Novak, B. J., Salzberg, S. L., Norell, M. A., Abbott, G. D., Dickinson, M. R., Vinther, J., Bull, I. D., Brooker, R. A., Martin, P., Donohoe, P., Knowles, T. D., Penkman, K. E., Onstott, T. (2019). Cretaceous dinosaur bone contains recent organic material and provides an environment conducive to microbial communities. eLife 8, e46205. doi:10.7554/elife.46205 · Open Access
- Keenan, S. W. (2016). From bone to fossil: A review of the diagenesis of bioapatite. American Mineralogist 101, 1943–1951. doi:10.2138/am-2016-5737
- Kim, J. K., Kwon, Y. E., Lee, S. G., Kim, C. Y., Kim, J. G., Huh, M., Lee, E., Kim, Y. J. (2017). Correlative microscopy of the constituents of a dinosaur rib fossil and hosting mudstone: Implications on diagenesis and fossil preservation. PLOS ONE 12, e0186600. doi:10.1371/journal.pone.0186600 · Open Access
- Schweitzer, M. H., Wittmeyer, J. L., Horner, J. R., Toporski, J. K. (2005). Soft-Tissue Vessels and Cellular Preservation in Tyrannosaurus rex. Science 307, 1952–1955. doi:10.1126/science.1108397
- Asara, J. M., Schweitzer, M. H., Freimark, L. M., Phillips, M., Cantley, L. C. (2007). Protein Sequences from Mastodon and Tyrannosaurus Rex Revealed by Mass Spectrometry. Science 316, 280–285. doi:10.1126/science.1137614
- Schweitzer, M. H., Zheng, W., Cleland, T. P., Goodwin, M. B., Boatman, E., Theil, E., Marcus, M. A., Fakra, S. C. (2014). A role for iron and oxygen chemistry in preserving soft tissues, cells and molecules from deep time. Proceedings of the Royal Society B: Biological Sciences 281, 20132741. doi:10.1098/rspb.2013.2741 · Open Access
- Boatman, E. M., Goodwin, M. B., Holman, H.-Y. N., Fakra, S., Zheng, W., Gronsky, R., Schweitzer, M. H. (2019). Mechanisms of soft tissue and protein preservation in Tyrannosaurus rex. Scientific Reports 9, 15678. doi:10.1038/s41598-019-51680-1 · Open Access
- Kaye, T. G., Gaugler, G., Sawlowicz, Z. (2008). Dinosaurian Soft Tissues Interpreted as Bacterial Biofilms. PLoS ONE 3, e2808. doi:10.1371/journal.pone.0002808 · Open Access
- Buckley, M., Walker, A., Ho, S. Y. W., Yang, Y., Smith, C., Ashton, P., Oates, J. T., Cappellini, E., Koon, H., Penkman, K., Elsworth, B., Ashford, D., Solazzo, C., Andrews, P., Strahler, J., Shapiro, B., Ostrom, P., Gandhi, H., Miller, W., Raney, B., Zylber, M. I., Gilbert, M. T. P., Prigodich, R. V., Ryan, M., Rijsdijk, K. F., Janoo, A., Collins, M. J. (2008). Comment on “Protein Sequences from Mastodon and Tyrannosaurus rex Revealed by Mass Spectrometry”. Science 319, 33. doi:10.1126/science.1147046 · Open Access
- Bern, M., Phinney, B. S., Goldberg, D. (2009). Reanalysis of Tyrannosaurus rex Mass Spectra. Journal of Proteome Research 8, 4328–4332. doi:10.1021/pr900349r · Open Access
- Nyakatura, J. A., Melo, K., Horvat, T., Karakasiliotis, K., Allen, V. R., Andikfar, A., Andrada, E., Arnold, P., Lauströer, J., Hutchinson, J. R., Fischer, M. S., Ijspeert, A. J. (2019). Reverse-engineering the locomotion of a stem amniote. Nature 565, 351–355. doi:10.1038/s41586-018-0851-2
- Perricone, V., Santulli, C., Rendina, F., Langella, C. (2021). Organismal Design and Biomimetics: A Problem of Scale. Biomimetics 6, 56. doi:10.3390/biomimetics6040056 · Open Access
Text und Abbildungen: CC BY-SA 4.0. Fehler gefunden? Issue eröffnen oder den Artikel auf GitHub bearbeiten.